03:看看这个东西
校准显微镜。一个连续元胞自动机产生了某种令人不安地像生物的东西。我们把它剥离到近乎一无所有,然后重建一个行动者改写自身未来条件的世界——并开始逐个删除部件,找出那个东西究竟住在哪里。
先什么都别读。
先看这个。
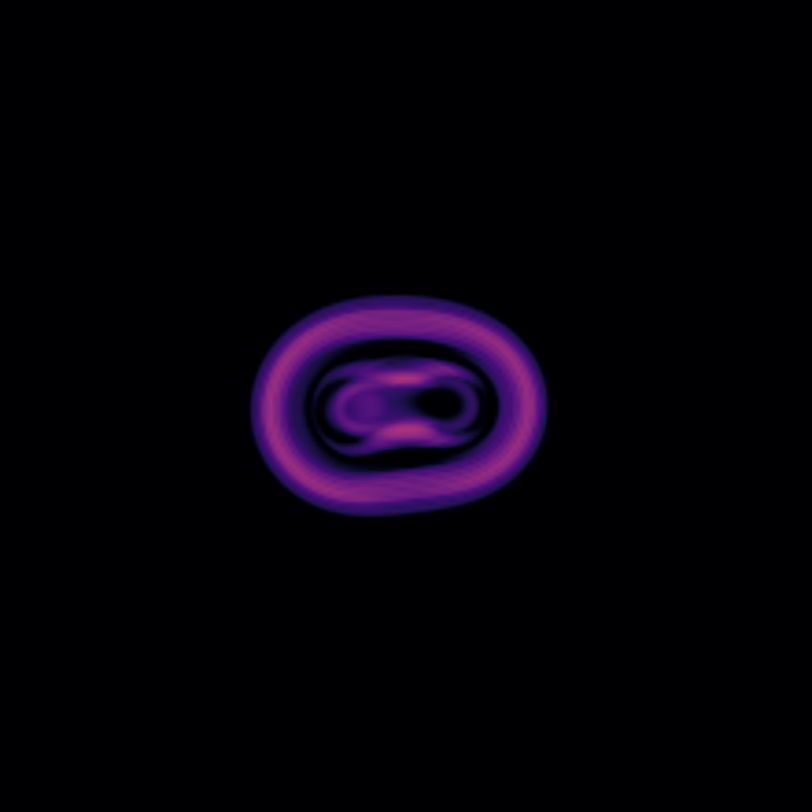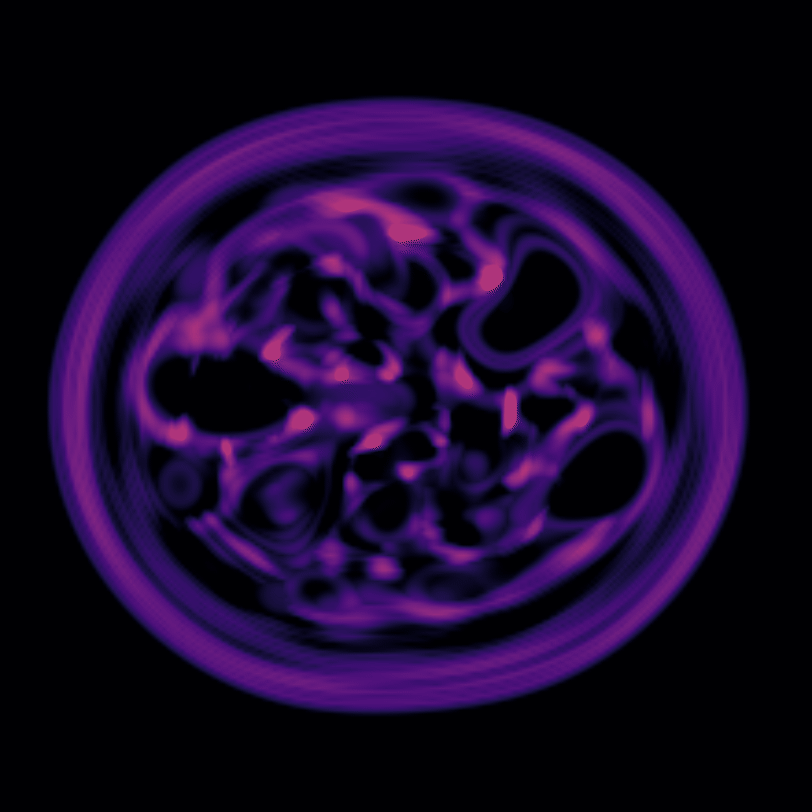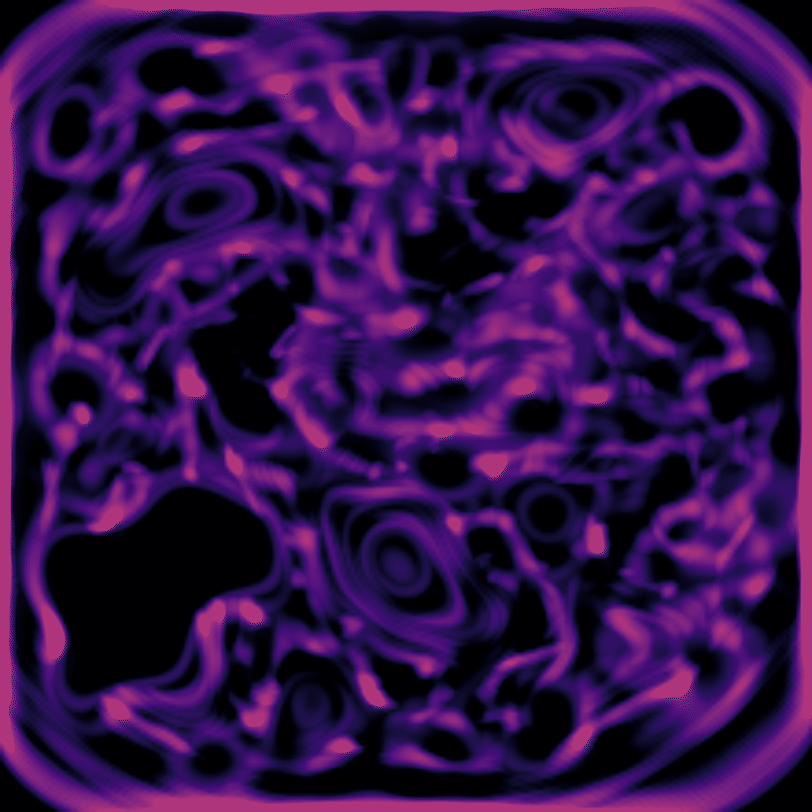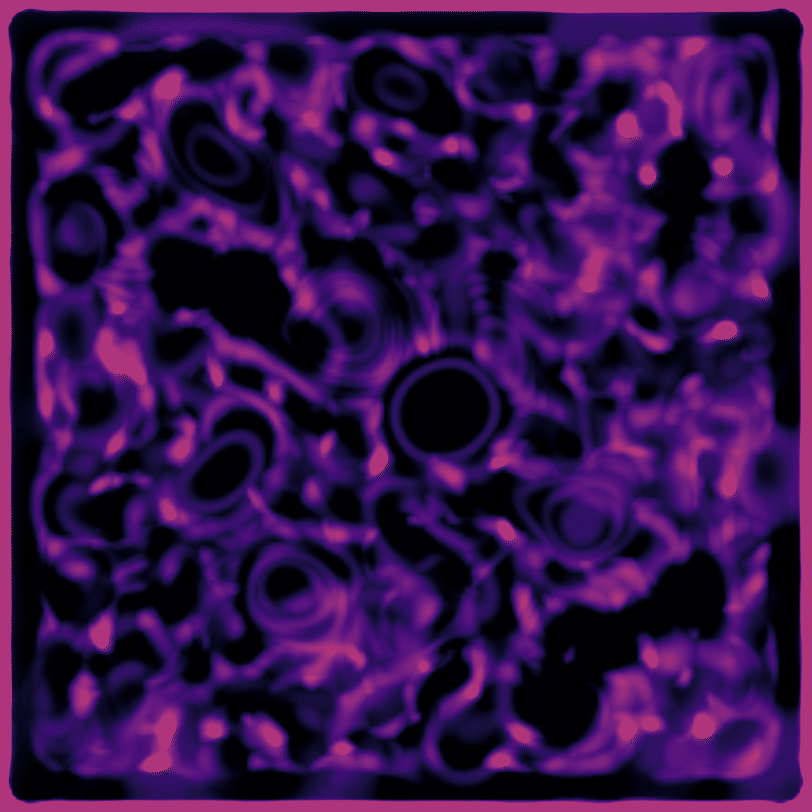
连续元胞自动机的一种局域状态随时间演化。
有东西在动。它似乎有边界。它不同部位的行为似乎各不相同:一条泛起涟漪的边缘、一块保持更致密的内部、一个似乎牵引着其余部分前行的前导区域。它的形状在行进中变化,而某种更大的组织却在这些变化中存续下来。看它三十秒,你就会开始预测它下一步要做什么。
如果你在毫无背景的情况下看到它,生物学语言会立刻到来:一个细胞、一个生物、一个有机体,甚至可能是一只动物。
这种反应有用。但它也是本书必须拆解的第一个东西。
你的大脑已经凭空造出了一个对象
在对机制一无所知之前,我们大多数人脑中已经闪过了类似这样的过程:
模式
↓
存续的模式
↓
会动的存续模式
↓
东西
↓
生物
注意这发生得多快,也注意触发它所需的东西有多么少。模拟中没有任何东西宣告我是对象。没有任何东西标出那个所谓身体的起止。没有任何东西证明此刻看到的模式与数个时刻后看到的模式是同一个体。
全是我们自己补上的。
所以本书的第一个问题不是*它是活的吗?*那个问题目前还大得毫无用处。第一个问题要小得多,也可回答得多:
为什么它看起来就这么像一个东西?
不存在生物变量
先从程序里没有什么说起。程序里没有暴露creature.move()或creature.keep_shape()的对象,没有动画路径,没有骨架,没有关节组,没有发布诸如保持左侧相连、把前端向前推、恢复轮廓这类指令的控制器。没有叫position_of_creature的变量,也没有叫head或tail的字段。
表观生物之下是一片数字场。每个位置根据附近的值发生变化,处处使用同一条规则,场就这样一步一步演化。这个系统是Lenia,一种连续元胞自动机(continuous cellular automaton),出名部分正是因为它的局域模式太容易用生物学语言描述。[1]
我们暂且抵制那种语言。我们实际观察到的是一个存续的局域模式——这个描述不那么刺激,但却是我们可以检验的。
这里解释的方向值得停留一下,因为它与普通软件正好相反。通常是程序员定义一个对象,然后对象产生行为。在这里:
程序员定义局域动力学
        ↓
动力学展开
        ↓
局域组织出现
        ↓
我们决定"对象"是不是一个有用的描述
这种倒转是人工生命如此迷人的重要原因,也是它如此容易骗到我们自己的原因。对象最先出现在我们的知觉里。之后我们才开始追问:机制里是否有任何东西,足以把那个表观边界当作一个真实的组织单元来对待。
真正在动的是什么?
看这个模式自左向右行进。
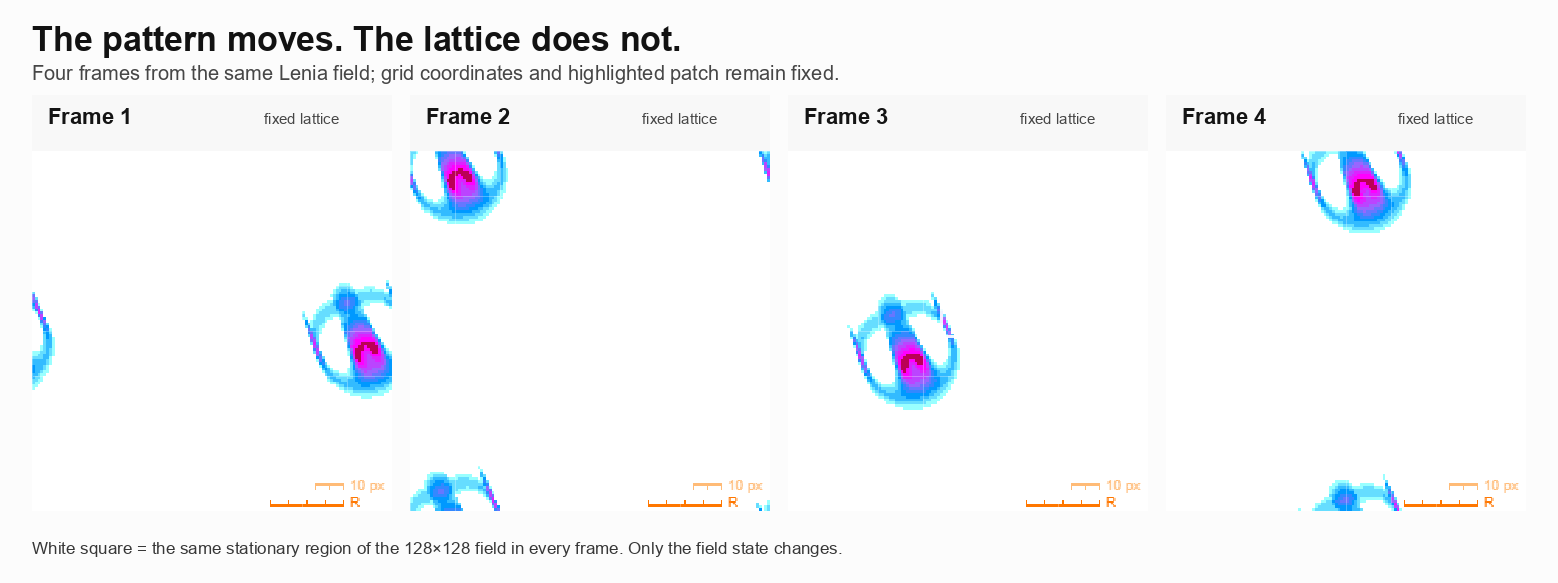
模式在场上移动,而底层的晶格保持不动。
网格没有动。各个位置也没有行进。位置(40, 17)永远在它一直所在的地方,持有更新规则最近一次赋给它的值。没有任何东西被输运。
实际发生的是局域重建的链条。一个位置的状态影响附近的更新;一个可辨认的组织在稍远处出现;那些状态影响下一轮更新;可辨认的组织又在更远处出现。没有任何东西穿过网格旅行——是组织传播了过去。
所以当我们说那个生物动了,操作性的描述是:
一种可辨认的状态组织在不断变化的空间坐标上被反复重建
这两句话描述的是同一视觉事件的不同层次。一个直观,便于发现现象。一个操作性强,便于测量现象。本书自始至终都需要两者。要紧的是在任何时刻都知道自己正在用哪一个。
波已经给了我们一个熟悉版本的问题:某种可辨认的东西可以传播,而它的物质并不随之旅行。于是剩下两种可能。或许同一性(identity)并不要求保留相同的物质——又或许我们只是极其擅长在根本不存在有用对象的地方看到对象。
动画无法在两者之间裁决。
最危险的词是"它"
看本章已经用过的句子。
它动了。它变形了。它存续下来了。
它这个词承载了巨大的、未经挣得的重量。在说某物存续之前,我们需要一条规则,来判定时刻t的模式与时刻t+1的模式是同一个延续组织的实例。那条规则可以基于形状相似,或位置,或轨迹,或内部结构,或因果连续性,或我们还没想到的东西。
我们还没有那条规则。视觉上的连续足以提出问题,离解决问题还差得远。所以几何描述能用多久就用多久,一旦实验迫使我们换就换。一个有帮助的纪律:把同一事件的两种描述并排放在一起。
| 诱人的描述 | 操作性的描述 |
|---|---|
| 它动了。 | 一种局域组织在变化的坐标上被重建 |
| 它吃了。 | 场量向某一区域再分配,从另一些区域移出 |
| 它愈合了。 | 一个测得的结构量回到扰动前的值 |
| 它记得。 | 一个后来的响应因早先的状态而可测地不同 |
| 它繁殖了。 | 出现第二个结构,其形态因果地依赖于第一个 |
左栏是我们注意到值得研究现象的方式,抛弃它只会让我们成为更差的科学家,而不是更好的。右栏才是我们实际能检验的。两者都不应悄悄取代对方,而整个领域的失败模式,就是第一栏开始被当作第二栏来报告的那一刻。
现在把几乎一切都拿走
Lenia留给我们一个现成的借口:也许那个表观生物依赖于所有那些连续状态、平滑相互作用和复杂形态。如果是这样,拿走丰富性就该连同生物一起拿走。
并没有。把一个计算系统剥离到近乎荒谬的程度,简单局域规则仍然产生任何单个组分都不曾表示的全局结构。五个细胞就足以说明。
康威生命游戏(Conway’s Game of Life)是一个完全由局域更新规则支配的二值晶格。其中一个五细胞模式被发现后叫作滑翔机(glider)。
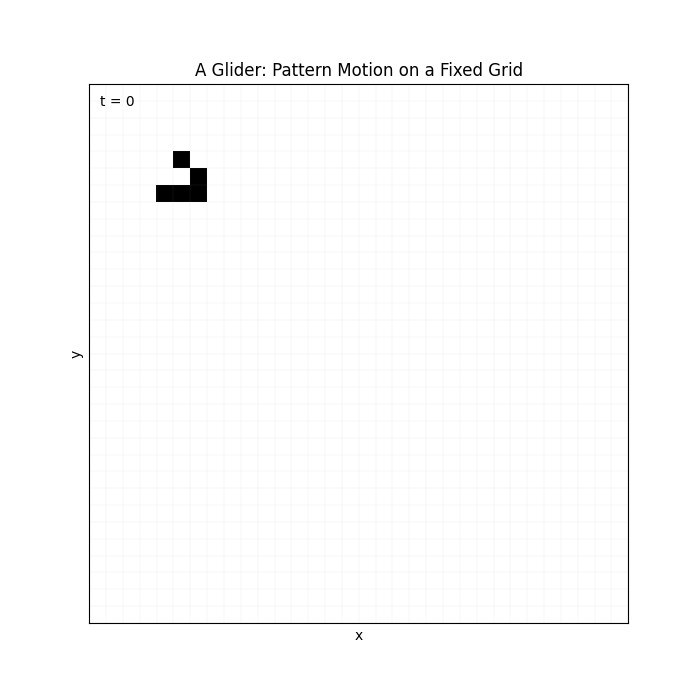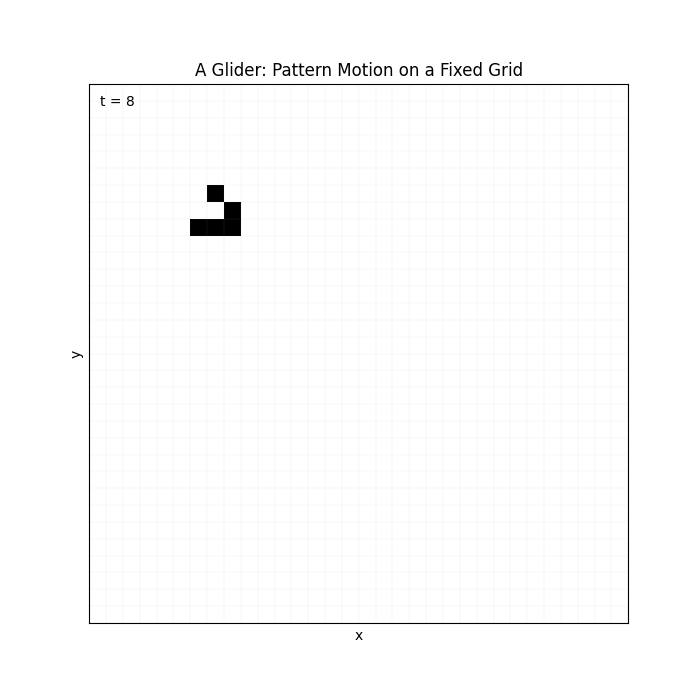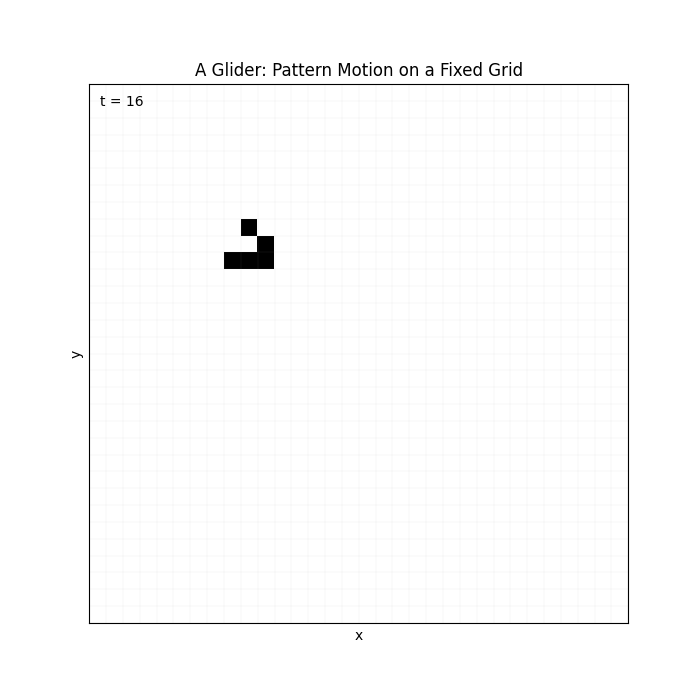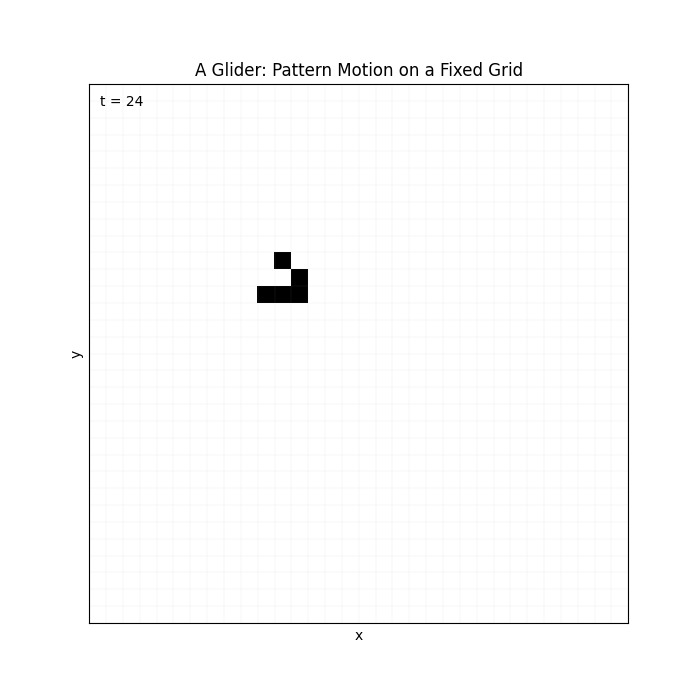
规则里没有任何东西说沿对角线移动。没有速度变量,也没有被输运的对象。然而模式在晶格上一次次重建自身,每次向对角线方向挪出一个细胞。
问什么存续下来了,答案惊人。不是相同的活跃细胞,不是相同的坐标,甚至不是每一步中间都相同的形状。但每四代,构型精确地回到最初的样子,只是沿对角线平移了一个细胞。
存续下来的是组织。这就分开了日常语言倾向于焊在一起的两个观念:物质同一性(material identity)问的是相同组分是否存续,而组织同一性(organizational identity)问的是组分变化时可辨认的模式是否存续。
滑翔机给了我们一个虽小却重要的结果:
可辨认的组织可以在没有存续的物质同一性的情况下存续。
我们没有找到有机体。我们找到了一种不需要固定身体的连续性。
晶格做不到的事
但滑翔机缺了重要的东西。它上周去过哪里?
让它穿过空晶格,沿途不留下任何标记;它经过之后的世界不包含它曾经存在过的任何痕迹。晶格是一个舞台,不记录任何东西。这使得过去对未来没有任何抓握力。
于是我们改一个地方。让简单组分改变它们穿行的世界,再让被改变的世界改变接下来发生的事。
一个留住遭遇的世界
新系统是一个受黏菌启发的粒子模型(Physarum-inspired particle model):一群极其简单的可动智能体,耦合到一片它们既能读取又能改变的场上。[2]
生物学名称解释的是想法的来源,不是模型是什么。多头绒泡菌(Physarum polycephalum)留下可影响后来行为的胞外痕迹;那个观察启发了具有类似反馈结构的计算模型。[3]关于该生物确立的任何东西,都不因此在模型身上确立。
机制很简单。智能体感知场、转向、移动并向场中沉积。场扩散并衰减。
于是:
智能体
 ↓
改变场
 ↓
场留下一道痕迹
 ↓
痕迹改变后来的行为
 ↓
智能体再次改变场
没有网络对象、路线规划器,也没有对最终出现结构的表示。只有这个循环。
智能体改变着决定它们自身未来行为的条件。
这种经由共享环境中留下的痕迹实现的协调,常被称为污痕通信(stigmergy)。[4]它正是我们需要的特征:现在发生的事可以留下某种东西,改变后来发生的事。
看网络出现
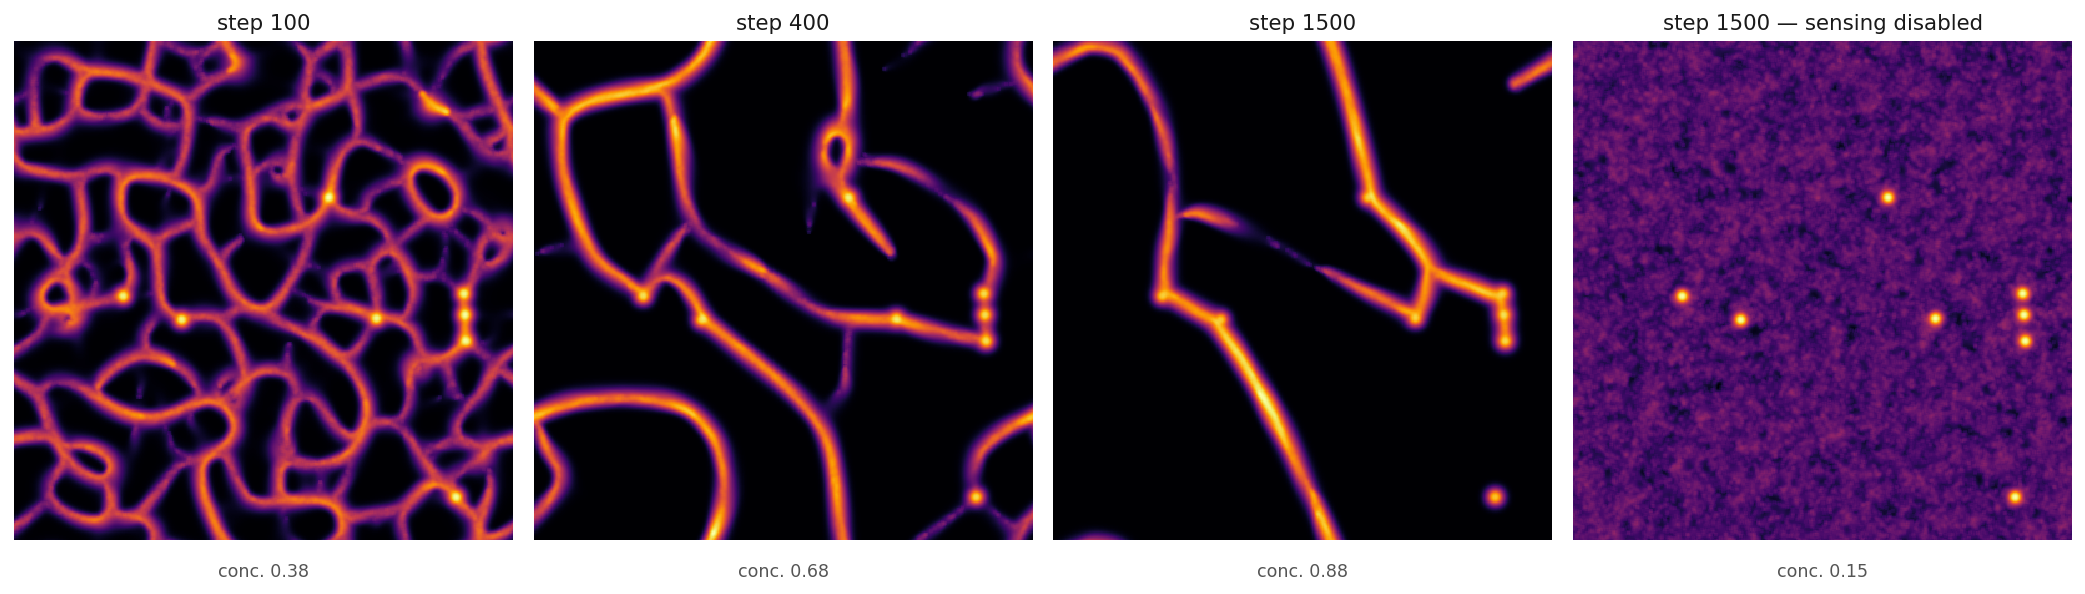
从随机散布的智能体和空场出发,一个网络出现了——生物学词汇立刻到来:轨迹、觅食、协调、记忆、有机体。同样,其中任何一个都还没挣得。
先排除无聊的解释。也许数千个沉积物质的行进智能体,无论有无反馈都会产生某种网络状的东西。关掉它们感知前人沉积物的能力,网络就消失在一片雾里。
集中度度量

反馈开启      0.883
反馈关闭      0.153
所以这里确实有一个可复现的现象:反馈环产生了宏观组织,一旦移除耦合,组织大体消失。不是记忆,不是觅食,不是有机体——但某种有组织的东西确实在发生,足够我们继续。
现在攻击那个显而易见的解释。
过去在哪里?
显而易见的假设是网络的历史住在场里。场是肉眼可见的积累之物,那就把它删掉。
让每个智能体都待在原地,把场彻底擦除。
25 步后与旧网络的相似度

场被擦除              0.897
未受扰动的延续        0.911
网络回来了。自然的解释是智能体本来就站在它们帮助开辟的通道里,所以它们的空间排布本身可能携带了早先网络的一部分,一旦沉积恢复就能把大部分重画出来。那个机制尚未被分离出来,而干预(intervention)所确立的范围更窄:场不是历史的唯一载体。
现在反转干预。保留场,删除整个人口,用随机位置和朝向的 naive 智能体替换全部两万个智能体。它们继承的只是一个在它们任何一员存在之前就被塑造好的世界。
25 步后与继承网络的相似度

naive 人口,继承场      0.658
naive 人口,空场         0.304
特异性对照(对照)很关键,因为一个人口可能只是对任何成熟场都有反应。它没有。放入网络 A 的 naive 人口,对它所继承网络的评分为0.658,对独立生长的另一个网络评分为0.297;用网络 B 做的镜像实验评分为0.619和0.339。效应特异于被给予的那段历史网络。
诱人的句子是新智能体记住了。它们没有——网络形成时它们一个都不存在。更小的陈述反而更奇怪:
一个人口的行为依赖于在它任何成员存在之前产生的结构。
两者都擦除,优势就如预期般消失:场和智能体合在一起构成这个模型的状态,所以同时重置两者实际等于重新开始。有信息量的是:单独移除任一候选载体都不够。智能体能部分重建场;场能部分把新智能体招募回早先的组织。两种干预都没把历史效应定位到某一个子系统,所以承载历史的东西分布在耦合系统之上。
那还不是记忆。它是历史依赖(history dependence):早先产生的某种东西可测地改变后来发生的事。
开始替换物质
完整的人口替换戏剧化但不自然。那就慢慢替换物质。
网络形成后,每五步删除 2% 的智能体,并以同等数量的随机位置 naive 替换者补入。持续两千步,原有人群不断流失:到运行结束,最初的 20,000 个智能体只剩 7 个,超过 99.9% 的建造者消失了。
而一个有组织的网络仍然在那里。
精确路线并不固定——但在未受扰动的系统里也不固定,那里的通道自行迁移、环路自行重排。所以两种连续性必须分开。路线同一性问的是这是不是同一个历史构型。组织连续性问的是系统是否仍在维持同一大类结构。
在持续替换下,路线同一性逐渐漂移,而有组织的机制以退化形式存续:
集中度度量

持续替换        0.49
未受扰动分支    0.93
反馈关闭        0.153
退化引出一个诱人的解释——也许替换在渐进地损伤网络。于是停止替换智能体,大部分差值反弹:
停止替换后的集中度

停止时       0.490
+100 步      0.581
+500 步      0.724
+1000 步     0.798
在观察窗口内没有回到未受扰动的值。但在这次运行里,大部分退化是持续替换的现行代价,而非累积损伤。
重要结果比网络不受更替影响要小。它显然受影响。存续下来的范围更窄:临近结束时维持网络的智能体,几乎全不是建造它的那批;新组分进入一个已被前人塑造的世界,被招募进延续的组织。
在此配置下,宏观组织在超过 99.9% 的原有人群被替换后仍然存续。
物质换了。别的东西延续了下来。
我们得摧毁什么?
本章没有任何东西让我们有理由把这些系统称为活的。我们没有确立有机体、记忆、智能、个体性。但拿掉那些解释并没有拿掉现象。
存续下来的东西,一部分直接可见于机制:模式可以传播而物质不随之旅行,滑翔机可以在活跃细胞变化的同时精确回到同一构型。更强的结果在干预后存活下来。在可写世界系统里,移除两个显而易见的历史居所中的任何一个之后,后来行为仍然依赖于早先活动——而在创造它的 99.9% 以上人口被替换后,有组织的结构仍然存续。
那是不同种类的证据,不应混淆,其中任何一个都不是生命的证据。但只是一个模式也没多少解释力。解释不断缩小;现象一直不消失。
剩下一个比出发时更好的问题。单独擦除场不够。单独替换人口不够。历史效应定位不到任何一个显而易见的子系统。所以与其问东西在哪里,不如问:
我们得摧毁什么,它才不再是同一个东西?
这个系统只能把这个问题带到这里。它维持一种组织;它没有给我们第二个干净的个体,让我们可以追踪其血统。
下一个系统有。它不只诱使我们凭空造出对象——它会诱使我们凭空造出有机体,而且看起来像在繁殖。
实验注记
本章受黏菌启发的实验结果来自一个实现、一种配置,干预均从共同检查点分叉。大多数条件是单次运行的演示,而非跨种子的群体水平估计。
报告了两个不同的量。集中度度量场在给定时刻携带多少结构;相似度度量当前网络与存储的参照网络之间的一致程度。两者不可比,每处围栏块都注明自己报告的是哪一个。不同实验中引用的未受扰动集中度(0.883和0.93)来自不同运行和时间点,不应视为矛盾。
本章的数值论断因此应严格按字面读:关于此配置的证据,而非一般稳健性的估计。
完整参数、相似度定义、零假设构造、干预协议、被丢弃的参数化、补充测量和失败运行见附录及配套实验材料。
参考文献
[1] Chan, B. W-C. Lenia: Biology of Artificial Life. Complex Systems 28(3), 251–286 (2019).
[2] Jones, J. Characteristics of Pattern Formation and Evolution in Approximations of Physarum Transport Networks. Artificial Life 16(2), 127–153 (2010).
[3] Reid, C. R., Latty, T., Dussutour, A. & Beekman, M. Slime mold uses an externalized spatial “memory” to navigate in complex environments. PNAS 109(43), 17490–17494 (2012).
[4] Theraulaz, G. & Bonabeau, E. A Brief History of Stigmergy. Artificial Life 5(2), 97–116 (1999).